南島語族遺傳溯源:閩臺交融的DNA證據
2024年3月26日用遺傳學數據重構人類進化譜系
李輝
\n\n\n\n復旦大學現代人類學教育部重點實驗室,上海 200433
\n\n\n\n\n\n摘要:人類起源與演化是最受關注的科學問題之一。近年來的遺傳學研究成果成爲理解人類演化歷史的最堅實證據。由於黑猩猩等類人猿與現代人的基因組差異極小,所以猩猩科與人科合併了,而黑猩猩更屬於其中的人族。人族源於大約700萬年前,其中,真人屬在200多萬年前源於南猿屬,是普通意義上的人類。人類前期演化出樹居人、能人、盧道夫人、匠人等,後期演化出直立人和智人兩大分支。基於對智人中的現代人、尼安德特人、丹尼索瓦人的基因組分析比較,發現他們是在80-60萬年前分化的,所以智人可以相應分爲南方智人(H. s. australis)、北方智人(H. s. septentrionalis)和東方智人(H. s. orientalis)三支。現代人都屬於南方智人,大約20萬年前發生了體質變化,在7萬年前走出非洲,擴散到全世界,形成現今的八個種族。Y染色體的譜系演化與種族的形成是同步發生的,因此兩者有較好的對應關係。正確認識人類歷史與種族差異,反對宣揚種族優劣的種族主義,有助於促進人類社會的和諧,也有助於推進醫學等相關科學的發展。\n\n\n\n
關鍵詞: 人類起源, 基因組,譜系分析,Y染色體單倍羣,人種
近來基於基因組學的遺傳學研究成果顛覆了以往的古生物學和生物分類法,甚至動搖了傳統的人類階段進化論。我們將根據最新的遺傳學研究成果,從猿類到現代人種來逐步重構人類的進化歷程。
\n\n\n\n\n\n\n\n類人猿的譜系
\n\n\n\n長期以來,人類認爲自己這個物種是如此的與衆不同,應該脫離於動物界,是一個全新的類羣。然而,隨着系統生物學和進化生物學的建立,生物學家認識到人類依然屬於靈長類動物的範疇,與其他的猿類有着很近的遺傳關係。在靈長類中,沒有尾巴的物種稱爲猿。現存的猿類有兩大類:小猿和大猿。小猿是各種長臂猿,一般單列爲一個科,是沒有爭議的。而對於大猿,傳統做法是分爲猩猩科和人科,猩猩科包括紅猩猩、大猩猩和黑猩猩三個屬,而人科只有人類一個屬。但是很多進化學家懷疑,把人科從猩猩科劃出來完全是人類一廂情願的做法。而近年來不斷完善的靈長類基因組學的研究,使得我們更深入地認識了猿類的系統發生關係,也確定人類並不是一種另類。
\n\n\n\n人科的譜系因爲形態特徵的模糊性,傳統的形態分類有着先天缺陷,不同的進化路線上可能出現類似的形態。而基因組的差異則是明確而且可以量化的,顯然是一種更好的進化學研究材料。兩個物種之間的基因組差異程度,與它們之間的分化歷史長度是成正比的。所以,通過與地質年代的校正,基因組差異可以轉化爲分化時間。一般來說,動物界中在大約1000萬年以內演化形成的各個物種可以劃在一個“科”內。人類與黑猩猩的基因組只有不到2%的差異,分化歷史也不到600萬年,顯然不可能分屬兩個科。所以,人科與猩猩科就合併了。目前國際上普遍採用的科名是“人科”(Hominidae)。其下再分猩猩亞科(紅猩猩)和人亞科(大猩猩、黑猩猩、現代人)[1]。但是紅猩猩和其他猩猩的分化年代遠超過1000萬年,所以或許也可以單列一個科。
\n\n\n\n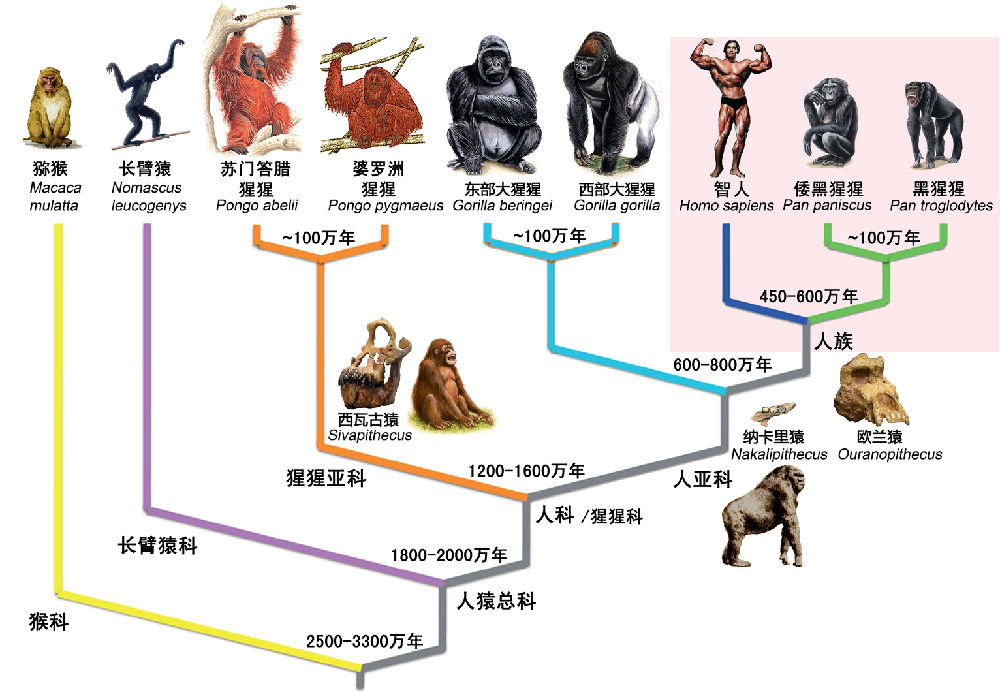
類人猿的遺傳譜系 倭黑猩猩和黑猩猩與現代人同爲人族。
\n\n\n\n在人亞科中,分出了大猩猩族和人族。很多被冠以“人”的物種,其實都包含在人族之中。根據目前的古生物學發現,最早的人族的物種是發現於非洲中部的沙赫人,距今大約700萬年。這顯然已經早於人類與黑猩猩的分化年代,所以黑猩猩自然在人族之內,而且從形態上已經比沙赫人更爲進化,有更大的腦容量。既然沙赫人都已被稱爲“人”,或許黑猩猩也應該被證明,不能再稱爲“猩猩”,至少叫做“黑猿”。實際上中國古代所稱的猩猩僅指紅猩猩,所以顏色有猩猩紅。
\n\n\n\n\n\n\n\n人族的譜系
\n\n\n\n人族的第二類物種是2000年發現於肯尼亞的千禧人,距今有約600萬年。千禧人的形態與黑猩猩非常接近,而其大腿骨的形態甚至比晚300萬年的南猿更接近人類(真人屬)。或許南猿並非我們的直系祖先,人類有可能從千禧人直接演化而來。不過由於超過5萬年的化石几乎無法分析DNA,所以遺傳學在人族演化研究中作用有限。而千禧人的化石也非常少,無法據此做出明確的判斷。
\n\n\n\n地猿發現於埃塞俄比亞,距今約500萬年。這一類羣的形態與黑猩猩更爲接近,非常有可能是黑猩猩的祖先。但是它們的牙齒像南猿的,所以還是難以判斷其屬於黑猩猩還是人類的分支。約400萬年前,南猿出現了,發展成了人族物種中一個興盛的類羣,目前發現的依次有湖畔南猿、阿法南猿、羚羊河南猿、非洲南猿、驚奇南猿、源泉南猿,延續了大約200萬年。肯尼亞平臉人能否成爲一個獨立的屬,目前還有爭議。從南猿演化出了兩個進化策略截然相反的類羣:傍人和真人。傍人非常粗壯,頭頂有着發達的矢狀嵴,也就是有發達的頭部肌肉,後部臼齒有現代人的兩倍大,但是顱腔很小。所以傍人有着發達的咀嚼能力,屬於四肢發達、頭腦簡單的類型,很像是一種猛獸。但最新研究認爲傍人主要是食草的。與傍人相反,真人則腦容量不斷增大,四肢和牙齒趨向於纖弱。發達的頭腦最終使得真人在進化中勝出,繁衍至今。
\n\n\n\n最有意思的是,距今二三百萬年前的非洲,曾經同時生活着好幾種人類的近親,有南猿、傍人、真人中的能人和盧道夫人,所以人類曾經並不孤單[2]。
\n\n\n\n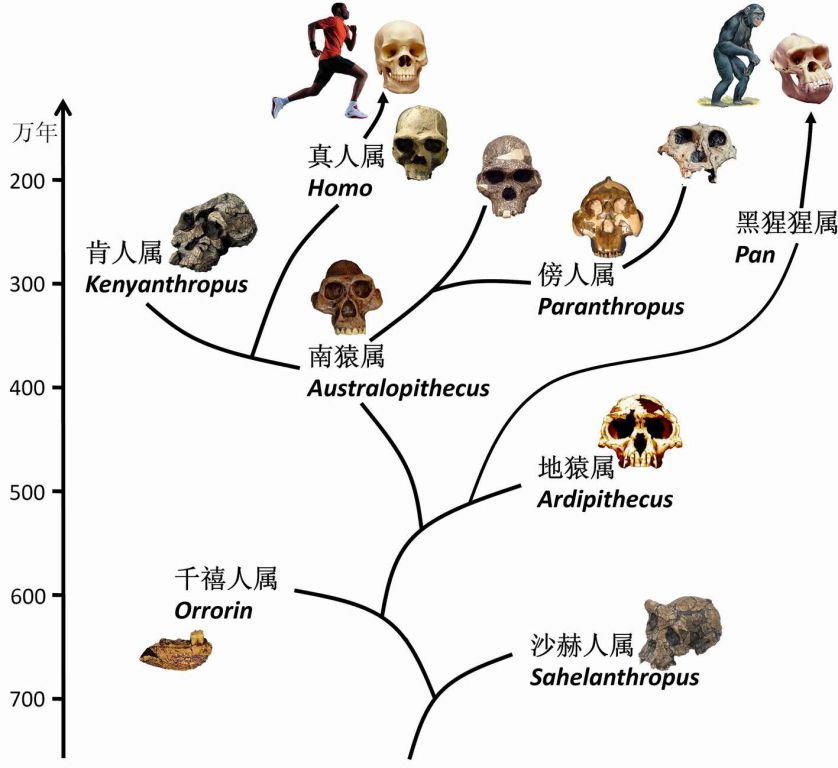
人族各屬的系統樹 距今300多萬年前,從南猿屬分出的真人屬最終勝出。
\n\n\n\n\n\n\n\n真人屬的譜系
\n\n\n\n我們傳統意義上稱的人類,實際上是狹義的人類概念,也就是生物分類學上真人屬的各個物種。真人屬起源於大約200多萬年前。目前找到的最早的真人化石是非洲東部約230萬年前的能人,這一人種可能延續到了大約140萬年前。但是2010年在南非的豪登發現的樹居人,在形態上比能人更原始,可能是更早出現的人類。不過目前找到的樹居人化石的時間段是距今大約190萬到60萬年,不排除今後還能發現更早的化石。盧道夫人可能是能人的一個分支,發現於肯尼亞,距今大約190萬年。
\n\n\n\n前期的人類除了上述三種以外,在180萬年到130萬年前的非洲東部和非洲南部,還演化出了另一種人類,匠人。匠人從腦容量等方面看,可能擁有比能人更高的智力,在工具製作方面也比能人更先進。與能人分化以後,匠人成爲我們現代人最有可能的直系祖先。由於前期人類化石的年代久遠,無法進行DNA分析,而四個物種並沒有都留下後代可供遺傳分析,所以分子遺傳學對於前期人類的譜系分析無法提供幫助。很有可能樹居人與能人在200萬年前已經分化,而在190萬年前盧道夫人和匠人從能人分化出來。
\n\n\n\n後期的人類傳統上分爲三大類,猿人(直立人)、古人(早期智人)、新人(晚期智人),曾經被認爲是人類發展的三個階段。現在,階段論早已被古人類學和遺傳學的研究結果所拋棄。首先,從古人類學的化石發現看來,直立人走出非洲,從西亞到東亞的擴張早至180萬年前。而分子遺傳學對現存的各個大洲的現代人分支進行了分析,無論是全基因組分析,還是線粒體DNA分析和Y染色體譜系分析都得到了一致結果,發現所有現代人都是20萬年以內重新起源於非洲的。所以現代人不可能是亞洲的直立人的後代,直立人和智人是兩個不同的分支,而不是兩個階段[3]。
\n\n\n\n從匠人演化出的直立人分支上,還可能分化出了數個近緣分支,包括法國的託塔維爾人、意大利的西布蘭諾人、格魯吉亞的格魯吉亞人。180萬年前的格魯吉亞人是迄今發現在非洲之外的最早的人類化石。這幾種人也往往被認爲是直立人的亞種。直立人的標準種是印度尼西亞的爪哇人,50萬年前東亞和東南亞的人類都屬於直立人的各個亞種,其中最著名的有北京猿人、藍田猿人、元謀猿人等。不過,元謀猿人的化石僅有兩顆牙。雖然直立人在東亞和東南亞廣泛分佈,但種羣可能非常小,很多分佈點持續時間很短,這些種羣已陸續滅亡,其中印尼爪哇島的梭羅人一直生存到了14萬年前。直立人中最奇特的是印尼東部弗洛勒斯島發現的弗洛勒斯人。這個人類物種生存於9.4萬—1.3萬年前,身材極其矮小,小於110釐米。這是迄今發現的最矮小的人類,可能是因爲數萬年生存於狹小的海島,應對貧乏的資源而產生的適應。由於特殊的形態,弗洛勒斯人一般被認爲是已經區別於直立人的獨立物種[4]。
\n\n\n\n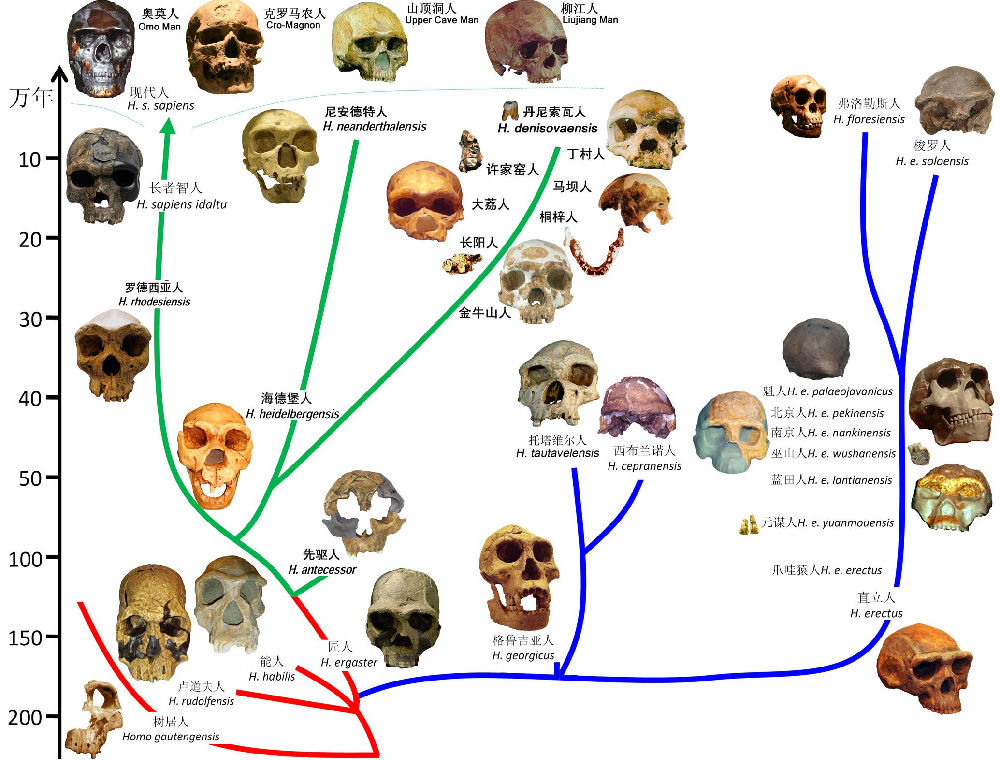
真人屬內部的譜系結構 智人與直立人是後期的兩大分支。
\n\n\n\n三分智人
\n\n\n\n智人的譜系研究最近有了重大進展。成功獲得尼安德特人[5]和丹尼索瓦人[6]的全基因組數據可能是近十年內人類進化研究中最重大的成果。歐亞大陸西部的尼人生活到距今大約3萬年前,歐亞大陸東部的丹人生活到距今大約4萬年前。通過比較尼人、丹人、現代人的全基因組差異,三者之間的演化譜系結構展示得清晰無遺。尼人和丹人之間有大約60萬年的分化,而他們與現代人都有大約80萬年的分化。所以這三個類型應該代表着智人的三個主要分支。現代人都是20萬年以內走出非洲的,其直系祖先可能是非洲早期智人——羅德西亞人。尼人廣泛分佈於歐洲和西亞,甚至散佈到中亞。丹人雖然發現於阿爾泰山區,但是可能代表着整個東亞和東南亞地區的早期智人。所以,早期智人和晚期智人的名稱意義並不確切,更好的名稱可以是南方智人、北方智人、東方智人。
\n\n\n\n不過,母系線粒體的譜系分析得出了稍有不同的三者間拓撲結構。現代人與尼人分開40多萬年,兩者與丹人分開大約100萬年[7]。純母系的結構與全基因組結構的差異,可能暗示着人類遷徙中的複雜故事,一個人羣接受其他人羣的女性可能是比較容易的。智人分化的年代,與猩猩、大猩猩、黑猩猩三個屬內各兩個物種的分化年代基本一致,原因可能是當時全球發生了氣候劇變。
\n\n\n\n智人的起源時間估計在大約120萬年前。迄今發現的最早的歐洲人——西班牙阿塔坡卡發現的先驅人就是那個年代的。先驅人已經具有了很多智人的特徵。但由於先驅人只是在西班牙曇花一現,可能不久就滅絕了,成爲了人類進化中的旁支,並沒有留下後代。最早明確屬於智人的人類物種是海德堡人。這一類羣主要發現於歐洲,生存年代大約在60萬到40萬年前。海德堡人的腦容量與現代人基本相當,可能是因爲他們身材巨大。歐洲海德堡人的平均身高達到了180釐米。有些學者認爲非洲同時期的人類也屬於海德堡人,比如南非發現的“巨人”,是人類物種中最高大的,達到213釐米。海德堡人可能有了語言,已經開始埋葬死者,很可能是三種智人分化之初的階段,屬於尚未形成形態差異的時期。
\n\n\n\n對於智人三個分支之間可能發生過的遺傳交流,也就是尼人和丹人有沒有遺傳成分傳到現存的現代人中,是人類進化研究中最引人入勝的課題。在尼人和丹人的基因組數據出來之前,對於三種智人之間的遺傳交流只能侷限於猜想。現在,通過比較三種基因組,我們已經能夠比較精確地知曉。在2010年之前,通過純父系的Y染色體和純母系的線粒體DNA分析,在現代人中沒有發現任何尼人或者丹人的成分。但是最近的全基因組分析得到了稍有不同的結果。非洲現代人中,依舊沒有發現任何尼人或丹人的遺傳成分。但是在非洲之外的現代人羣中,都發現有1%—4%的尼人基因組成分。而且,這些基因交流是在大約7萬年前現代人剛剛走出非洲的時候發生的,其後就再也沒有發生過,雖然現代人與尼人在歐洲共存了數萬年。所以走出非洲以後分化形成的世界各地的人羣中都保存了相同的尼人基因比例。
\n\n\n\n丹人雖然發現於北亞地區,但是在亞洲大陸上的現代人羣中沒有發現任何丹人的遺傳成分。反而,在大洋洲的新幾內亞土著人羣中發現了大約6%的遺傳比例[8]。很有可能新幾內亞土著的祖先在遷徙途經中南半島時接觸到了丹人羣體,發生了基因交流。所以可以確定,丹人的地理分佈很廣泛,至少從北亞到東南亞都存在,而且人口不少,有機會把可觀的遺傳基因流傳到新幾內亞現代人中。丹人生活的時期,與“東亞早期智人”的生活時期大致重合,可以推斷所謂“東亞早期智人”與“丹人”就是同一個物種。
\n\n\n\n東亞現代人爲何沒有與丹人發生基因交流,這是一個不容易解釋的事實。研究者曾經期待早期的東亞現代人會有更多的尼人或者丹人遺傳成分。但是,2013年新發布的北京周口店地區4萬多年前的田園洞人基因組,卻與現代的中國人幾乎沒有差別,沒有更多“早期智人”的遺傳成分[9]。看來,三種智人之間的基因交流可能發生過,但是非常有限。
\n\n\n\n\n\n\n\n現代人的8個分支
\n\n\n\n非洲的南方智人在至少16萬年前開始發生明顯的形態變化,在埃塞俄比亞演化出了長者智人,其形態間於羅德西亞人和現代人之間。但在埃塞俄比亞還發現了幾近20萬年前的奧莫現代人,說明長者智人可能在更早時間就形成了,只是有些羣體並沒有演化成現代人的形態。所以現代人至少20萬年前就起源了。但是這些最早的羣體並不能全部生存下來,並不能把所有的基因庫都流傳到現代。因此,從不同遺傳方式的基因組區段,可以把現代人的譜系追溯到不同的年代。純母系的線粒體譜系可以最遠追溯到大約20萬年前,而純父系的Y染色體只能追溯到14.2萬年前。這說明女性有更公平的生育權,也更容易被其他羣體接受。所以20萬年到14.2萬年之間的很多女性都留下了直系後代至今,而期間的父系只有1個最終留下直系後代至今。
\n\n\n\n由於男性對族羣的主導性,父系的遺傳類型(Y染色體類羣)容易變少。所以不同羣體之間差異最大的遺傳物質是Y染色體類羣,也叫做Y染色體單倍羣。全世界的Y染色體單倍羣構成了一個可靠的譜系。Y染色體的主要單倍羣的形成需要長期的隔離演化,這與現代人種族的隔離演化機制是一致的。所以現代人發展早期,Y單倍羣與人種應該有過很好的對應關係。不過由於近幾千年來人羣的大規模融合,這種對應關係稍有打亂。
\n\n\n\nY染色體的根部類羣是A型,僅存在於非洲。其次是B型,也在非洲。所以從Y染色體來看,現代人肯定起源於非洲。C以後的類羣(C—T)從B分化出來的年代大約是7萬年,所以現代人走出非洲的年代不會早於7萬年。A、B、C、D、E這五種類羣,每一類內部的亞型都是大約6萬年前開始分化形成的。這一時段就是現代人最早的種族形成時期。在距今7萬多年前,地球上發生了一次巨大的災難,蘇門答臘島上的多峇火山發生了超級大爆發,史稱多峇巨災。此後地球進入了冰期,許多動物種羣滅亡,人類羣體也大量滅亡。留下的少許小羣體隔離分佈在非洲中部到東北部,形成了數個種族。其後由於冰期的海平面下降,大陸之間出現了很多新的陸地連接,人類羣體開始向各大洲遷徙,種族進一步演化。
\n\n\n\n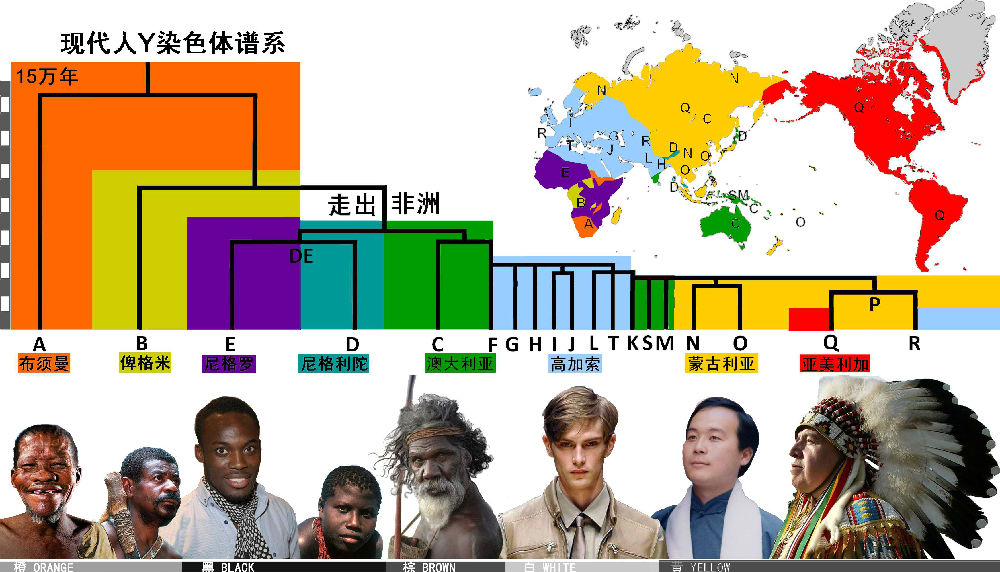
全世界的Y染色體類羣分化與現代人8個種族的形成是同步的
\n\n\n\n1863年,德國生物學家海克爾繪製了一張人類種族起源圖譜。在這張圖譜中,全世界的人類分成12個種族。現在,我們對全球的人羣有了全面的普查,所以發現海克爾遺漏了2個矮人種族——非洲的俾格米人與亞洲的尼格利陀人。對各人種的遺傳基因的分析也發現,海格爾列出的某些人種其實是其他人種的混合羣,比如奴比人種和卡佛人種是黑人種與侯騰圖人種的不同混合羣,德拉威達人種是地中海人種與澳洲人種的混合,馬來人種是蒙古人種與尼格利陀人種的混合。而美洲人種與北極人種的差異,以及澳洲人種與巴標人種的差異,其實並不大。
\n\n\n\n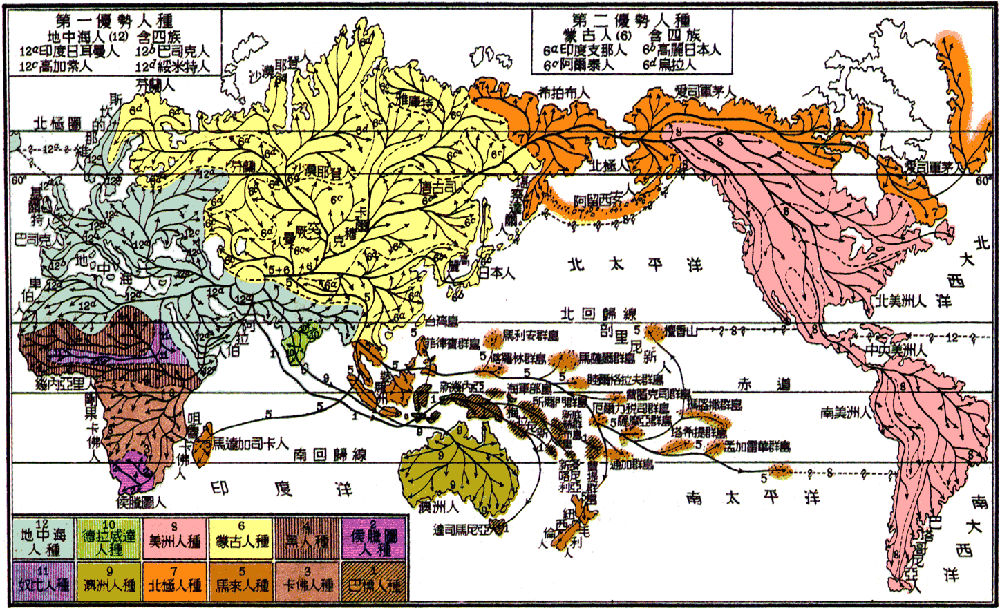
海克爾(Ernst Haeckel)在《自然創造史》中繪製的人類種族起源圖譜,馬君武譯,商務印書館1936年版。
\n\n\n\n全世界的人羣一共有5種膚色:橙、黑、棕、白、黃。從全基因組的分析[10]看來,全世界的人羣可以分成8個人種:布須曼、俾格米、尼格羅、尼格利陀、澳大利亞、高加索、蒙古利亞、亞美利加。按照體質形態特徵,全世界的現代人也可以分爲上述8個人種。近年來,由於政治上反種族主義的需要,西方遺傳學界提出特別的觀點,認爲種族的概念是沒有遺傳學根據的。其證據主要是種族之間都存在過渡類型,沒有絕對的界線;大多數基因等位型在各個種族內都有一定的頻率分佈。實際上,種族主義的錯誤在於認爲種族有高低貴賤之分,這導致了人類歷史上的多次種族滅絕慘劇。反對種族主義,是要反對種族歧視,反對種族在先天上有優劣之分,而不是否認種族在外形和遺傳歷史上的客觀差異。如果說黑人與白人在生物學上沒有差異,這顯然不符合客觀事實。西方遺傳學界提出的種族之間有過渡,其實是近幾千年來人羣的混合造成的。例如,在加勒比羣島上,還存在美洲印第安人與黑人之間的過渡類型,顯然是人羣混合形成的,而不是美洲人從非洲漸變而來的過渡類型。等位基因類型在種族之間也大多沒有必要差異截然,畢竟現代人與黑猩猩的基因組也只有2%以下的差異。所以種族的基因組之間,只要有少數基因有特異性分佈,就足以支持種族的生物學存在了。
\n\n\n\n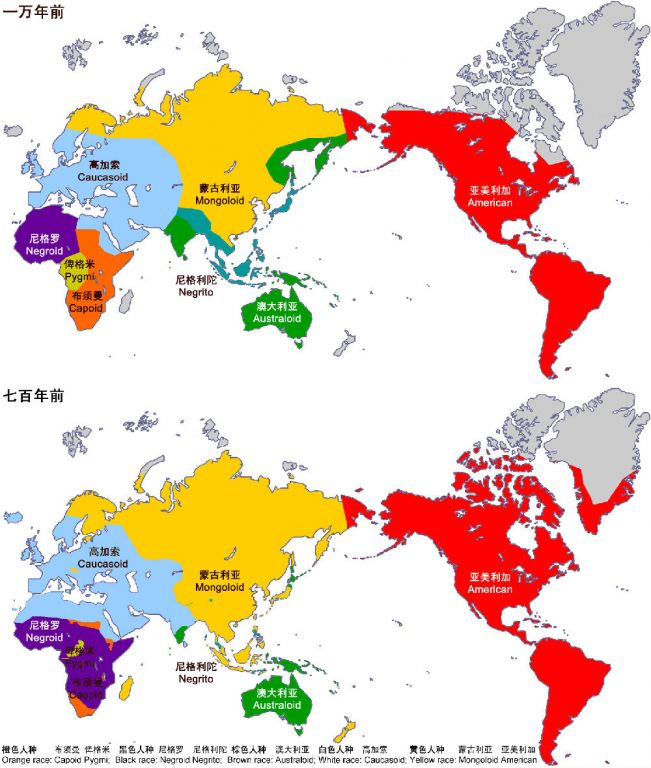
現代人8個種族的歷史地理分佈示意圖 灰色部分爲無人區
\n\n\n\nY染色體譜系與人種的同步演化
\n\n\n\n與現代人各個種族對應關係最好的遺傳材料是Y染色體的譜系。根據Y染色體的譜系分析,最古老的類型是A羣,集中分佈於非洲南部和東北部,也零星分佈於中非。相關的人種是非洲南部的布須曼人(舊稱開普人種或侯騰圖人種),非洲東北部的尼羅-撒哈拉人(奴比人種)也與之有關。A羣下面的有些亞型只出現在埃塞俄比亞的一些羣體中。最近的研究指出,A羣可以追溯到非洲中部偏東北地區,非洲南部布須曼人的A羣也是從北方而來。布須曼人的科依桑語系的語音是世界語言中最爲特別的,有着複雜的搭嘴音。包括尼羅-撒哈拉人在內的布須曼人種的膚色呈橙紅色,而不是常見的非洲人的黝黑色。考古學和遺傳學研究都發現,非洲的黑人只是最近一千年來從非洲西部擴張到非洲東部和南部,此前非洲大部分區域的居民都是橙色人種。在黑色人種和橙色人種的接觸中,Y染色體A羣也流入了非洲中南部的黑人中。
\n\n\n\n年齡其次的Y染色體類羣是B羣,大致對應中非、剛果等地熱帶雨林中的俾格米小矮人。非洲東部坦桑尼亞的哈扎比人Y染色體也多爲B羣,他們的身高也同樣偏矮。俾格米人種非常適應在熱帶雨林中生活,有些村落完全建造於雨林的樹冠上。他們的膚色也偏橙色,不同於西非尼格羅人的黑色,所以也算是一種橙色人種。矮小的俾格米人與高大的尼格羅人在毛髮上特徵差異也很明顯。成年俾格米男人有着濃密的鬍鬚,而尼格羅人的鬍鬚一般很稀疏。
\n\n\n\n兩個橙色人種與其他人羣的分化都在7萬年以上。其他分支都是7萬年之內走出非洲的人羣的後代。其中D和E最早是黑人的類羣,他們可能是六七萬年前在埃塞俄比亞與也門所在的紅海口處分離。攜帶E羣的人羣回到非洲,一路向西,成爲非洲西部的尼格羅大黑人;而攜帶D羣的人羣輾轉向東遷徙,成爲東南亞的尼格利陀小黑人。兩種黑人的分佈區域相距如此遙遠,這是非常不可思議的格局。而在身高上也達到兩個極端。尼格羅人非常高大,非洲西部有些種羣的成年男子往往超過180釐米,而尼格利陀人成年人一般不會超過150釐米,甚至更爲矮小。尼格利陀人現在僅存於緬甸以南的安達曼羣島、泰國和馬來西亞邊境山區、菲律賓中北部山區。但是其對應的Y染色體D羣廣泛分佈於青藏高原、日本列島和中南半島。所以這些區域很可能是尼格利陀人的歷史分佈區,不過後來在黃色或棕色人種的影響下發生了人羣體質變化。很有意思的是,菲律賓的尼格利陀人中沒有發現D羣Y染色體,而有着來自新幾內亞的棕色人種的C羣和K羣。這可能是棕色人種後期的擴張影響。而日本列島最早的居民繩文人有着D羣染色體,身材也在150釐米以下,應該屬於尼格利陀人種,但是面貌特徵卻是典型的澳大利亞棕色人種。所以,在遷徙路線的末端,人種之間交流的複雜程度遠超我們的想象。
\n\n\n\n攜帶着Y染色體C羣和F羣的人羣跨過紅海以後,繼續向北進發,F來到了兩河流域,而C來到印度河流域。在這兩個區域中,兩個人羣演化成了不同的人種。C人羣形成了棕色人種,在五六萬年前擴散到東亞、東南亞和澳大利亞、新幾內亞、美拉尼西亞,也被稱爲澳大利亞人種。而F人羣則是白種人和黃種人的祖先。
\n\n\n\n大約在三四萬年前F大類開始從兩河流域、裏海南岸擴張,其下有G到T等14種亞型。G、H、I、J、L、T在歐亞大陸西部成爲高加索人種。高加索人種雖然往往被稱爲白人,但是膚色不一定很白。大約2萬年前O和N人羣來到東亞形成蒙古人種,取代棕色人種成爲東亞的主體人羣。大約1.3萬年前,N人羣從東亞擴張到北亞和北歐。也是在大約2萬年前,Q和R人羣來到了中亞,但是他們並沒有在當地形成獨特的種族,而是大多融入了周邊的種族。大多Q人羣向東遷徙加入蒙古人種,部分繼續東遷,大約1.5萬年前跨過白令海峽進入美洲,形成亞美利加人種。R是中亞地區的主要類羣,但同時大量向西遷徙加入高加索人種,成爲南歐人羣的主流。
\n\n\n\n隨着Y染色體譜系研究的深入,對Y染色體各個類羣分化時間的分析越來越精確,人類羣體演化的歷史將越來越明確。客觀準確地認識人類的演化歷史,瞭解種族、民族和羣體方方面面的異同,使我們更好地理解人羣之間、人與自然之間應有的和諧關係,更好地維護人羣的身體健康和社會健康。
\n\n\n\n\n\n\n\n參考文獻
\n\n\n\n1. Locke D P, Hillier L W, WarrenW C, et al. (2011) Comparative and demographic analysis of orang-utan genomes.Nature, 469 (7331): 529-533.
\n\n\n\n2. Tattersall I. (2000) Once wewere not alone. Scientific American, 282 (1): 56-62.
\n\n\n\n3. Stringer C. (2012) Evolution:What makes a modern human. Nature, 485 (7396): 33–35.
\n\n\n\n4. Brown P, Sutikna T, Morwood M J,et al. (2004) A new small-bodied hominin from the Late Pleistocene of Flores,Indonesia. Nature, 431 (7012): 1055-1061.
\n\n\n\n5. Green R E, Krause1 J, Briggs AW, et al. (2010) A Draft Sequence of the Neandertal Genome. Science, 328(5979): 710–722.
\n\n\n\n6. Reich D, Green R E, Kircher M,et al. (2010) Genetic history of an archaic hominin group from Denisova Cave inSiberia. Nature, 468 (7327): 1053–1060.
\n\n\n\n7. Krause J, Fu Qiaomei, Good J M,et al. (2010) The completemitochondrial DNA genome of an unknown hominin from southern Siberia.Nature, 464 (7290): 894-897.
\n\n\n\n8. Reich D, Patterson N, Kircher M,et al. (2011) Denisova Admixture and the First Modern Human Dispersals intoSoutheast Asia and Oceania. Am J Hum Genet, 89 (4): 516–528.
\n\n\n\n9. Fu Qiaomei, Meyer M, Gao Xing, etal. (2013) DNA analysis of an early modern human from Tianyuan Cave, China.PNAS, doi: 10.1073/pnas.1221359110.
\n\n\n\n10. The HUGO Pan-Asian SNPConsortium. (2009) Mapping Human Genetic Diversity in Asia. Science, 326:1541-1545.
\n\n\n\n\n