誰在害怕遺傳祖先?
2024年7月23日
韩国人口起源:线粒体DNA与Y染色体标记的分析
2024年8月29日Y染色體與基因家譜
發佈時間:13年03月12日,作者:李 輝(復旦大學現代人類學教育部重點實驗室)
家譜是人們追思先祖、銘記血緣關係的重要工具,同一個家譜中記錄的是相同姓氏的家族成員。人們的姓氏大多繼承自父親,而Y染色體是嚴格的父子相傳的基因組片段,所以有共同姓氏的男性可能有相同或相近的Y染色體類型。在漫長的歷史中,家譜資料往往會因為各種原因佚失,而Y染色體這份基因組中的家譜可以為我們重構現實文本的家譜。Y染色體上穩定的點突變(SNP)可以永遠在父系後代中流傳,可以構建可靠的父系基因譜系;而其上突變較快的微衛星位點(STR)又可以用以估算時間。因此,Y染色體可用以研究很多姓氏宗族的歷史,甚至千百年前的歷史疑案。重建姓氏、家譜與Y染色體的關係必將成為歷史人類學研究的重要內容。基因家譜必將成為和諧社會的一大利器。
現代社會中,幾乎每人都有自己的姓氏。人的姓氏不僅僅是簡單的符號,還有著豐富的文化、歷史、宗族背景。以血緣為脈絡的姓氏記錄著各家族的源流,常被用於尋根溯源的相關研究。同姓的人相遇,往往會說“我們500年前是一家”,編制一份理清同姓的人們之間的親緣關係的家譜,是很多人的願望。數千年來大部分姓氏都從父系傳遞,而人類基因組中的Y染色體更嚴格地遵循父系遺傳,因此姓氏與Y染色體有很好的平行對應關係。隨著Y染色體上眾多遺傳標記的發現,用Y染色體來分析同姓人群內的關係,甚至全世界人群間的關係,將在分子人類學領域發揮出重要作用,基因家譜必然會在現代社會中發揮重要影響。
宗族姓氏與Y染色體的父系遺傳
父系遺傳關係,是家譜中記載的主要遺傳關係。雖然姓氏普遍遵從父系遺傳,但並不完全遵從。就中國的社會情況而言,收養、繼養、入贅,甚至直接改姓,會影響姓氏與父系血統的關聯程度。很多影響父系遺傳關係的情況並不被忠實記錄在家譜中。另一方面,中國大多數姓氏起源於春秋時期的各個封國,當封國內的百姓都以國為姓時,這些同國百姓的血統可能本來就不一致,這就造成了很多比較大的姓氏內部遺傳結構不一致。同姓不一定同源。即便這樣,當我們不拘泥於群體中同一姓氏的研究,而是針對有著明確的歷史記載甚至家譜的宗族進行研究,姓氏無疑還是一個很好的遺傳標記。
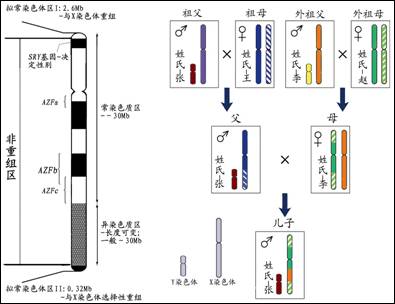
與姓氏不同,人類的Y染色體直接代表著父系遺傳,永遠是父子相傳的,不會受到任何社會文化和自然因素的影響。人體內有23對染色體,其中22對常染色體中,每一對染色體都有一條來自父系,一條來自母系,兩條染色體在傳代過程中對應的部分會發生交換,從而造成混血效應,這就是遺傳學上說的重組。另一對性染色體包括X染色體和Y染色體。在女性體內,X染色體也是成對的,分別來自父母雙方,所以也不能避免混血的影響。而在男性體內,卻只有一條來自母親的X染色體和一條來自父親的Y染色體,也就是說男性的Y染色體只能來源於父親,所以人體性染色體的遺傳方式決定了Y染色體遵從嚴格的父系遺傳(圖1)。
Y染色體與X染色體之間是否會發生重組呢?要回答這個問題,必須先了解Y染色體的結構。人類Y染色體DNA大約包含六千萬個鹼基對,其中染色體兩端的5%為擬常染色體區域,在傳代過程中與X染色體相應區段會發生重組,而主幹部分的95%為非重組區域,不與任何染色體發生重組。所以,Y染色體主幹部分的此特性,保證了子代能完整地繼承父代的Y染色體主幹而不受混血影響,保證了Y染色體主幹的嚴格父系遺傳。這是一條不能篡改的基因家譜。
所以,當佚失的或者不忠實記載的姓氏家譜已經無法作為追尋祖先的可靠依據時,以現代的分子生物學技術為基礎,研究Y染色體主幹的類型,是直接追溯宗族姓氏成員之間的父系關係的最佳方法,是驗證祖先與後代的父系關聯,補全家譜的唯一手段。例如,在曹操的後人中分析Y染色體特徵,我們可以了解曹操本人的Y染色體特徵,也可以了解現代曹氏後人之間的親緣遠近。實際上,在一段有較可信歷史記錄的時期內,整個家族的姓氏與父系遺傳的關聯是可以保證的,所以家族的姓氏往往與固定的Y染色體類型共同傳遞,緊密關聯。
穩定中變化著的Y染色體
在一代一代的父子相承的傳遞過程中,Y染色體也在慢慢地積累著變化。正是因為遺傳突變的積累,使得人類父系遺傳體系中,距離越遠的個體的Y染色體差異也越大。Y染色體上的突變形成的個體差異主要有兩大類,單核苷酸多態(SNP)和短串聯重複(STR)。DNA分子由四種鹼基(A、T、C、G)按照一定的順序連接而成,SNP是僅僅一個位置上的鹼基類型變化。Y染色體上的同一個SNP在人群中一般只有兩種類型。STR則是在染色體的特定區段,由幾個鹼基組成一個單位重複出現,不同的Y染色體上的同一個STR位置往往有不同的重複拷貝數。SNP和STR由於突變性質和突變速度不同,在分析中有著不同的用途。
要確立父系遺傳體系,最重要的前提是祖先的突變可以穩定的保留在後代的Y染色體上。SNP突變因為突變速率極低,可以做到在後代中永久地保留,後代只能在祖先的突變基礎上積累新的突變,而不會丟失祖先的突變特徵。通過比較人類與黑猩猩的Y染色體差異,以及大家系中的Y染色體的差異程度,Y染色體上的SNP突變的速率被計算了出來。每出生一個男子,一個染色體位置上發生SNP突變的概率為大約三千萬分之一。實際上由於Y常染色質區的保守性,以及人類歷史上大量男子都沒有男性後代保留至今的事實,實際的群體中突變率應該低幾個數量級。而我們通常研究的是Y染色體非重組區大約三千萬個鹼基對的常染色質區,按照每個鹼基對三千萬分之一的突變率,這個區段內每個男子平均都會有一個新的突變。這個新的突變隨機地出現在Y常染區的任意一個點上,如果這個突變了的點上再發生一次突變,那麼這個突變就在後代中丟失了,我們就無法通過後代確定祖先的Y染色體突變譜。但是,同一個點上先後發生兩次突變的概率,按照概率計算方法就是三千萬分之一的平方,也就是九百萬億分之一,相對於人類自古以來的人口,這個概率就近似於零。所以我們可以說,絕大多數情況下,祖先的Y染色體上出現的SNP突變特徵在後代中能夠找到,而後代只能在祖先Y染色體突變譜的基礎上增加新的突變。
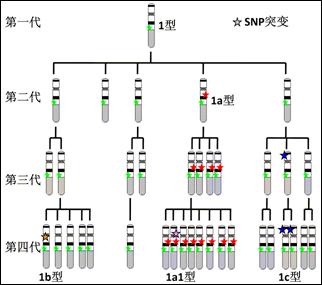
由多個SNP突變構成的一種突變系列組合被稱為一種單倍型。例如圖2中就有5個SNP突變,陸續構成5種單倍型。其中1型是其他單倍型的祖先型,其他單倍型都是後代型。祖先型與所有後代型合稱為一個單倍群。一個家族的所有Y染色體理論上都屬於一個單倍群,因為其中所有的男性都應該來自同一個祖先。
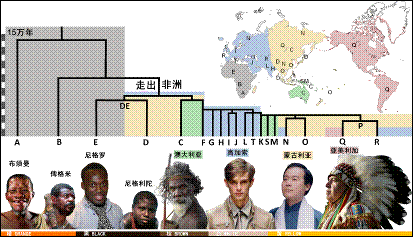
當然,單倍群的概念可大可小。大而言之,全世界的Y染色體都屬於一種單倍群,都來自20多萬年前的一個東非晚期智人男子。進而,全世界又可以分為20種主幹單倍群,編號從A到T(圖3)。最古老的A和B單倍群都沒有走出非洲,C和D單倍群最早來到了澳洲和亞洲,E單倍群來到了亞洲又回到非洲,F單倍群衍生出GHIJ等單倍群在西方形成歐羅巴人種,衍生出K單倍群並形成NOPQ等單倍群在東方形成蒙古人種,其中O單倍群成為了中國人的主流,而Q單倍群成為美洲印第安人的主流。所以,Y染色體的譜系構建出了全人類的一部大家譜。
Y染色體上的時鐘
利用Y染色體上穩定遺傳的SNP,我們可以構建出個體或家族之間明確的遺傳淵源。而且,既然SNP有穩定的突變速率,當我們統計出不同人的Y染色體之間的突變差異數,將差異數除以速率,經過換算就可以估算兩條Y染色體之間的分化時間,這就是計量進化時間的“分子鐘”。但是,由於SNP的突變速率實在太低,個體之間的突變差異散布在Y染色體的各處,只能使用Y染色體全測序來尋找,而目前全測序的成本太高,尚不能普遍應用。這一缺點被Y染色體上的另一遺傳標記STR彌補了。
一些STR位點分佈在Y染色體上的固定位置,每一個STR位點內部的重複單位在傳代過程中改變著拷貝數,這種改變也是有著固定的速率的。而STR突變速率要比SNP大得多,在家系中每出生一個男子每個STR位點突變概率大約是三百分之一。一般的Y染色體分析中,我們調查15個STR位點,其總體突變率大約是二十分之一。而Y染色體上大約有150個4——6個鹼基重複的STR,如果分析全部的STR位點,那麼總突變率大約是二分之一。這一高突變率就非常有利於估算不同Y染色體之間的分化時間,因此STR位點成為了Y染色體上的“時鐘”。
STR的突變是雙向性的,拷貝數可以增加或減少。有同一祖先的不同個體的同一STR位點,可能有不同突變方向和重複數。同SNP一樣,數個不同位置上的STR也可以構成單倍型。在群體中分析STR單倍型的多樣性程度可以計算群體的共祖時間。假設一個STR每次突變都只增加或者減少一個重複單位,也就是一步(single-step)突變模型,且群體有著恆定的有效群體大小,就可由公式t=-Ne×ln(1-V/Ne×μ)推算出某特定Y-SNP發生的大致時間。公式中,Ne是有效群體大小,μ是突變率,ln是自然對數,V是觀察到的群體中的某一STR數值的方差,計算得到的t是經歷的世代數,再乘以每一世代的年數即可得到時間。
以Y染色體上STR的總突變率二分之一來估算,幾乎每個人可以構成獨特的單倍型。然而,由於突變是一步一步發生的,父系親緣關係越近的個體之間的STR單倍型越相似,一個純粹由父系傳遞的姓氏應有相近的STR單倍型。但是,由於STR的突變速率的不穩定性,加上回覆突變的影響,STR計算時間的誤差還是極大。所以,準確地分析Y染色體單倍群的分化時間,還是要用全Y染色體SNP的突變譜,在這方面,復旦大學的人類學實驗室的研究走在了世界最前沿。理論上,有了足夠數量的Y染色體SNP和STR後,通過調查一個姓氏宗族內的男性的單倍型,就能夠很清楚的構建其家族Y染色體的譜系樹,乃至編寫一部清晰的基因家譜。
Y染色體研究姓氏家譜的實踐
多項研究證實各國的姓氏傳承是相對穩定的。利用Y染色體來檢測歷史上的家族關係疑案,有多項成功的案例,較有意思的是美國第三任總統托馬斯·傑斐遜因被懷疑與女僕有過孩子而遭起訴,通過比對傑斐遜的叔叔、女僕的兩個兒子的男性後代Y染色體多態位點,最終結論傑斐遜是女僕的最小兒子的生父。Y染色體不但能夠解決數百年的疑案,還能追溯到數千年前的歷史並證實了聖經中的傳說。聖經中記載,猶太人中的祭司是由猶太教的第一祭司長Aaron開始按血緣代代相傳,而身為德系猶太人祭司的Skorecki發現他與一個西班牙系猶太人祭司的體質特徵差別很大,為此他和研究Y染色體的專家Hammer教授合作,以Y染色體上多態位點YAP和DYS19來分析猶太教祭司的單倍型,結果顯示,德系和西班牙系的猶太祭司與非祭司的猶太人相比有較近的親緣關係。也就是說,祭司們可跨越3300年追溯到一個共同的父系祖先。Y染色體的分析與聖經故事的完美契合著實讓人吃驚。
對於中國的姓氏與Y染色體的相關性,也有許多研究見諸報導。多項研究對同一地區內居住的李姓、王姓和張姓等無關男性個體Y染色體遺傳多態性分析表明,此三姓氏無關男性個體Y染色體的遺傳多態性豐富,與不同姓的漢族無關男性群體遺傳多樣性比較差異不顯著。這說明,漢族的大姓內部基本沒有同源性,相關Y染色體研究只能在明確的姓氏宗族中開展。宗族的譜系整理只能通過Y染色體進行,而不能僅憑同姓或同祖居地推斷。
漢族大姓氏內部的不一致,有很多可能的原因。在理想的情形下,每種姓氏都有一個唯一來源,即該姓氏的奠基者只是一人或是有相同Y染色體單倍型的多人,在姓氏傳承過程中沒有發生過干擾(改姓、非親生等),此時一種姓氏可以被一種SNP和STR的單倍型來鑒定。但是中國的大多數姓氏起源並不單一。周朝的姓氏大多是以封國為氏,後改為姓。比如曹國的王室後代姓曹,其僕役後人也可以姓曹,甚至整個封國內所有百姓後代都可以姓曹。而曹國內的百姓來源本來就是多樣的,有著各種各樣的Y染色體,所以中國的姓氏總體上內部父系血緣不一致。
另外,猶如Y染色體STR單倍型隨時間而演化出越來越多的類型一樣,姓氏在傳承過程中經歷的時間越長,其受到的社會干擾越多,顯示出的差異也越大。在中國,姓氏有近5000年的歷史,來源複雜且存在避禍改姓、避諱改姓、過繼改姓、皇帝賜姓與貶姓、少數民族用漢姓等等問題。舉個簡單的例子,中國的100個大姓中有53個據稱改自於姬姓。如此,研究中國的姓氏難度極大,但是中國又有編修家譜的傳統,Y染色體的基因家譜研究就對釐清這紛繁複雜的血緣關係有很大幫助。
家譜是一種以表譜形式記載某一同宗共祖以血緣關係為主體的家族世系繁衍兼及其他方面情況的特殊圖書體裁。也就是說,入譜者必須是同宗共祖,即使同姓,若不同祖,也不能修入一部家譜之中。在中國的廣大農村,人們一直有著同姓聚居的習俗,加上婚姻半徑較小,由家譜確定的某一地域內同姓人群,可以認為是有相同或相近Y染色體的父系隔離群體,這也就為分子人類學分析Y染色體DNA多樣性提供了極好的研究模型。
然而,某些家譜裡有假託、借抄的內容,因此對於家譜資料的使用必須審慎。但是,在Y染色體檢驗這種無可辯駁的科學證據面前,任何家譜都可以得到檢驗和修正。姓氏、家譜和Y染色體的關聯研究必然成為社會大眾編制家譜的新利器,成為研究中國人起源與演變的重要方式,開創歷史人類學研究的新篇章。